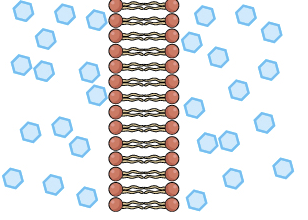

La difusión simple es un mecanismo de transporte pasivo mediante el cual las moléculas se desplazan espontáneamente desde una región en la que su potencial químico es mayor hacia otra en la que es menor, sin que la célula necesite aportar energía metabólica para impulsar ese movimiento. Cuando se produce en un medio homogéneo y las condiciones permiten relacionar el potencial químico con la concentración, este proceso se manifiesta como un desplazamiento neto de partículas desde las regiones de mayor concentración hacia las de menor concentración. En las células, la difusión simple tiene una importancia fundamental porque permite el intercambio de determinadas sustancias entre el medio extracelular y el intracelular a través de la bicapa lipídica de la membrana plasmática, sin que intervengan proteínas transportadoras específicas. Su funcionamiento depende de la naturaleza fisicoquímica de las moléculas, de las propiedades de la membrana y de las diferencias de concentración o de potencial químico existentes entre ambos lados de la barrera.
Para comprender por qué ocurre la difusión simple, es necesario considerar que las moléculas poseen energía térmica y se encuentran en movimiento continuo. En líquidos y gases, las partículas experimentan desplazamientos microscópicos aleatorios como consecuencia de sus interacciones térmicas con las partículas circundantes. Aunque cada molécula puede desplazarse en cualquier dirección, cuando existe una distribución desigual de partículas, el movimiento colectivo produce un flujo neto desde las regiones con mayor concentración hacia las regiones con menor concentración. Esto no significa que las moléculas dejen de moverse en sentido contrario, sino que, en promedio, atraviesan más partículas una superficie imaginaria desde el lado de mayor concentración que desde el lado de menor concentración. Por tanto, la difusión no requiere que cada molécula identifique la dirección de menor concentración ni que exista un mecanismo celular que la conduzca deliberadamente hacia ella. El flujo neto emerge de la naturaleza estadística del movimiento molecular y de la desigual distribución espacial de las partículas.
La segunda ley de la termodinámica ayuda a explicar por qué este fenómeno se produce espontáneamente. En un sistema aislado, los procesos espontáneos tienden a desarrollarse en la dirección que aumenta la entropía total, es decir, la cantidad de configuraciones microscópicas compatibles con el estado macroscópico del sistema. Una distribución inicialmente concentrada en una región presenta menos configuraciones espaciales posibles que una distribución más homogénea. En consecuencia, el movimiento molecular aleatorio tiende a dispersar las partículas hasta alcanzar una distribución de equilibrio, siempre que no existan barreras impermeables, fuerzas externas u otras condiciones que mantengan un desequilibrio. En sistemas biológicos abiertos, como las células, la interpretación debe considerar además el intercambio de materia y energía con el entorno. Por ello, la tendencia a la dispersión no implica que todas las sustancias deban presentar concentraciones iguales dentro y fuera de la célula en cualquier momento.
La difusión simple a través de una membrana biológica presenta características particulares porque la membrana plasmática no constituye una lámina uniformemente permeable a todas las sustancias. Su estructura fundamental consiste en una bicapa de fosfolípidos, cuyas cabezas polares interactúan con los medios acuosos y cuyas colas hidrofóbicas forman una región interna poco favorable para la permanencia de moléculas cargadas o muy polares. Esta organización permite que la membrana funcione como una barrera selectiva: determinadas moléculas pueden incorporarse a su interior lipídico y atravesarlo, mientras que otras encuentran una barrera energética considerable. Por ello, la difusión simple no depende exclusivamente de que exista una diferencia de concentración entre ambos lados de la membrana; también requiere que la sustancia tenga características químicas compatibles con el paso a través de su interior.
El mecanismo de difusión simple transmembranal puede comprenderse mediante tres etapas consecutivas. En primer lugar, la molécula se aproxima a la superficie de la membrana desde el medio acuoso. En segundo lugar, si sus propiedades fisicoquímicas lo permiten, se distribuye desde ese medio hacia la fase lipídica, atraviesa el interior de la bicapa mediante movimiento molecular y alcanza la superficie opuesta. En tercer lugar, abandona la membrana y se incorpora al medio acuoso situado al otro lado. Este mecanismo se describe mediante el modelo de solubilidad y difusión, según el cual la permeabilidad depende tanto de la facilidad con que una sustancia se incorpora a la membrana como de la velocidad con que se desplaza dentro de ella. En consecuencia, una molécula puede presentar una elevada movilidad en una solución acuosa y, sin embargo, atravesar lentamente una membrana si su incorporación a la fase lipídica resulta energéticamente desfavorable.
La razón por la que las moléculas pequeñas y no cargadas suelen atravesar la bicapa lipídica con mayor facilidad reside en la combinación de su tamaño, polaridad, estado de ionización y afinidad por los lípidos. Los gases como el oxígeno y el dióxido de carbono son ejemplos importantes porque son moléculas pequeñas que pueden distribuirse en la región hidrofóbica de la membrana y desplazarse a través de ella. Algunas moléculas polares pequeñas y sin carga, como el agua y el etanol, también pueden atravesar la bicapa, aunque su permeabilidad depende de sus propiedades particulares y de la composición de la membrana. Por el contrario, los iones como el sodio, el potasio y el cloruro presentan dificultades importantes para atravesar el núcleo hidrofóbico, porque su carga eléctrica y su capa de hidratación los estabilizan en el medio acuoso. Las moléculas grandes y polares, como la glucosa, también presentan una permeabilidad muy baja por difusión simple. Por esta razón, muchas sustancias esenciales necesitan proteínas de membrana para atravesarla a una velocidad fisiológicamente significativa.
La capa de hidratación merece especial atención porque explica por qué incluso una molécula pequeña puede experimentar una barrera considerable al atravesar la membrana. En el agua, las moléculas polares y los iones interactúan con moléculas de agua que se orientan alrededor de ellos y forman una envoltura de hidratación. Cuando una sustancia pasa del medio acuoso al interior hidrofóbico de la bicapa, parte de estas interacciones favorables con el agua debe perderse o reorganizarse. El proceso requiere superar una barrera energética que depende de la carga, la polaridad, el tamaño y la capacidad de establecer interacciones con los lípidos. Al alcanzar el medio acuoso situado en el lado opuesto, la molécula puede volver a establecer interacciones con el agua. Así, la difusión a través de una membrana no consiste simplemente en recorrer una distancia física, sino en desplazarse entre ambientes con propiedades químicas diferentes.
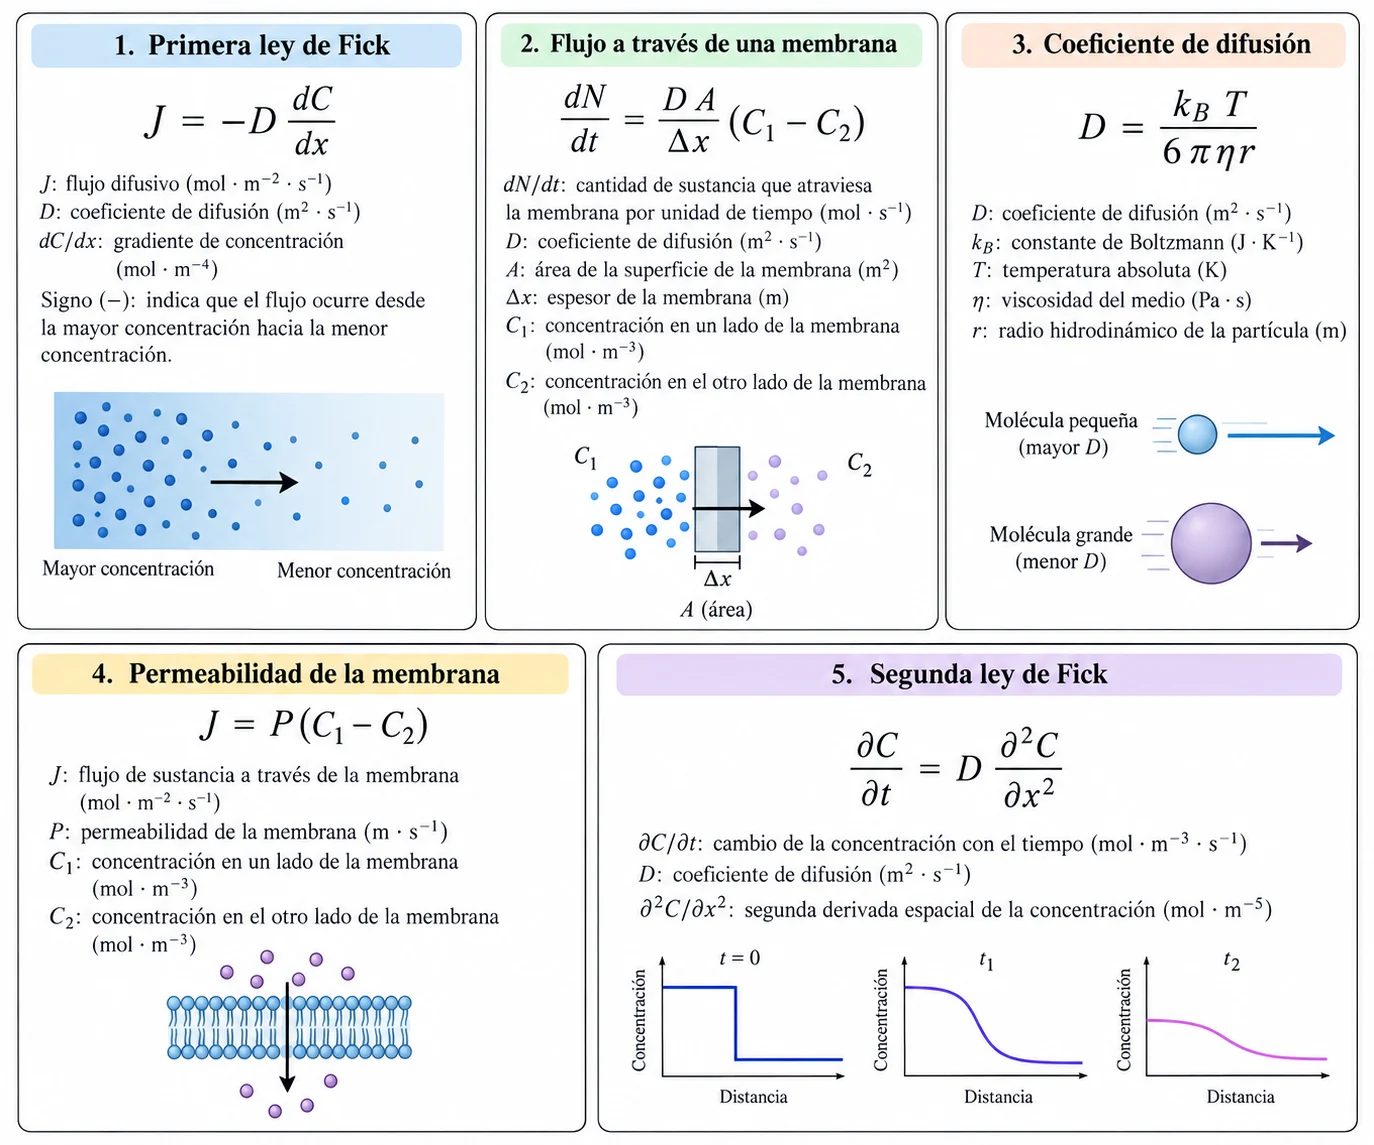
La velocidad con la que se produce la difusión simple puede describirse mediante las leyes de difusión de Fick. La primera ley de Fick representa matemáticamente la relación entre el flujo difusivo y el gradiente de concentración. Para observar la expresión matemática correspondiente, véase la figura.
La cantidad de sustancia que atraviesa una superficie por unidad de tiempo depende de la superficie disponible para la difusión, de la diferencia de concentración entre ambos lados y de la distancia que las moléculas deben recorrer. Para observar la expresión matemática que representa esta relación, véase la figura.
El coeficiente de difusión expresa la facilidad con la que una sustancia se dispersa en un medio determinado. Su valor depende de las propiedades de la molécula y del ambiente en el que se desplaza. En una solución, el tamaño hidrodinámico de la partícula y la viscosidad del medio influyen en su movilidad: en condiciones comparables, las partículas de mayor tamaño suelen desplazarse con menor rapidez que las más pequeñas, mientras que el aumento de la viscosidad tiende a dificultar su movimiento. La temperatura también influye porque modifica la energía térmica y la movilidad molecular. No obstante, estas relaciones deben interpretarse con cautela cuando se aplican a membranas, debido a que la bicapa lipídica es un medio heterogéneo cuyas propiedades no son equivalentes a las de una solución acuosa.
La permeabilidad de la membrana constituye otro factor esencial. La relación entre el flujo de una sustancia y la diferencia de concentración entre los dos lados de una membrana se representa mediante una expresión matemática específica. Para observar dicha expresión, véase la figura.
La composición de la membrana también modifica la difusión simple. Los fosfolípidos pueden diferir en la longitud y el grado de insaturación de sus cadenas de ácidos grasos, características que influyen en el empaquetamiento de la bicapa y en su ordenamiento molecular. El colesterol, por su parte, modifica las propiedades físicas de las membranas de acuerdo con la composición lipídica y las condiciones de temperatura. Estos cambios pueden alterar la movilidad de las moléculas dentro de la fase lipídica y la facilidad con que determinadas sustancias atraviesan la barrera. Por ello, la permeabilidad no es una propiedad idéntica en todas las membranas celulares: puede variar entre tipos celulares, entre compartimentos de una misma célula y según el estado físico y químico de la membrana.
La diferencia de concentración explica la dirección del transporte neto de una sustancia sin carga, pero en el caso de los solutos eléctricamente cargados es necesario considerar también el gradiente eléctrico. La combinación de ambos factores constituye el gradiente electroquímico. En consecuencia, la dirección espontánea del movimiento de un ion depende tanto de la diferencia de concentración como de la diferencia de potencial eléctrico entre los compartimentos. Sin embargo, reconocer la influencia del gradiente electroquímico no significa que los iones atraviesen libremente la región hidrofóbica de la bicapa. Debido a su carga y a su elevada estabilización en el agua, la mayoría de los iones necesita canales u otros mecanismos de transporte para atravesar las membranas biológicas a velocidades relevantes. El gradiente electroquímico determina la dirección termodinámicamente favorable del movimiento, mientras que la permeabilidad de la membrana determina si ese movimiento puede realizarse y con qué rapidez.
Es importante distinguir la difusión simple de la difusión facilitada. Ambas son formas de transporte pasivo y no requieren un suministro metabólico directo de energía para impulsar el soluto contra su gradiente. La diferencia fundamental reside en la vía utilizada. En la difusión simple, la sustancia atraviesa directamente la fase lipídica de la membrana; en la difusión facilitada, el paso ocurre mediante proteínas específicas, como canales o transportadores. Estas proteínas permiten que sustancias poco permeables a través de los lípidos, entre ellas numerosos iones y moléculas polares, crucen la membrana. Además, los transportadores pueden mostrar especificidad por determinadas sustancias y saturación cuando sus sitios de unión se encuentran ocupados, mientras que la difusión simple a través de una bicapa homogénea no presenta saturación por ocupación de un transportador.
La difusión simple también debe diferenciarse del transporte activo. En el transporte activo, una proteína de membrana permite acumular una sustancia en contra de su gradiente electroquímico mediante el acoplamiento a una fuente de energía, que puede proceder directamente de la hidrólisis del trifosfato de adenosina o indirectamente de otro gradiente previamente establecido. En cambio, la difusión simple no puede mantener por sí sola una acumulación neta de una sustancia en contra de su gradiente electroquímico. Su función consiste en facilitar la redistribución espontánea de moléculas permeables hasta que se alcanza el equilibrio o hasta que otras condiciones del sistema modifican continuamente la distribución. Esta diferencia resulta esencial para comprender cómo las células mantienen concentraciones internas distintas de las externas: lo consiguen mediante la actividad coordinada de mecanismos de transporte, reacciones metabólicas y barreras selectivamente permeables, no mediante la difusión simple aislada.
Cuando se alcanza el equilibrio de difusión, las moléculas no dejan de moverse. Lo que desaparece es el flujo neto debido a la diferencia de potencial químico que impulsaba la redistribución. Las partículas continúan atravesando el medio en ambas direcciones, pero los movimientos opuestos se compensan estadísticamente. Por esta razón, el equilibrio dinámico no debe confundirse con la inmovilidad molecular. Asimismo, en los sistemas celulares pueden existir estados estacionarios en los que las concentraciones se mantienen relativamente constantes sin que exista un equilibrio termodinámico completo. Esto sucede cuando la entrada, la salida, la producción y el consumo de una sustancia se compensan a lo largo del tiempo. Una concentración intracelular estable, por tanto, no demuestra por sí misma que la difusión haya alcanzado el equilibrio.
La segunda ley de Fick complementa esta explicación al describir cómo cambia la concentración con el tiempo cuando existe difusión no estacionaria. Para observar la expresión matemática correspondiente, véase la figura.
En el organismo, un ejemplo especialmente importante de difusión simple es el intercambio de oxígeno y dióxido de carbono. En los pulmones, el oxígeno se desplaza desde el aire alveolar hacia la sangre porque existe una diferencia de presión parcial que favorece su movimiento, mientras que el dióxido de carbono se desplaza en sentido opuesto cuando las condiciones de presión parcial son favorables para su salida hacia los alvéolos. La difusión de estos gases a través de las barreras biológicas depende de la diferencia de presión parcial, de la superficie disponible para el intercambio, del espesor de la barrera y de las propiedades de difusión del gas. En los tejidos, el consumo de oxígeno por el metabolismo celular contribuye a mantener las condiciones que favorecen su llegada desde la sangre hacia las células, mientras que la producción metabólica de dióxido de carbono favorece su desplazamiento hacia la sangre. En estos ejemplos, el movimiento no requiere que una proteína transportadora impulse directamente cada molécula de gas a través de la bicapa lipídica, aunque la transferencia total también depende de las propiedades de los tejidos y de las condiciones de perfusión.
El agua representa un caso que requiere una precisión adicional. Las moléculas de agua pueden atravesar directamente la bicapa lipídica por difusión, pero en muchas membranas biológicas una proporción importante del flujo se produce a través de proteínas especializadas llamadas acuaporinas. Cuando el movimiento neto de agua está impulsado por diferencias en el potencial químico del agua asociadas a diferencias de concentración de solutos, el proceso se describe como ósmosis. Por tanto, aunque la difusión de moléculas de agua y la ósmosis están estrechamente relacionadas desde el punto de vista molecular, no deben tratarse como términos completamente intercambiables: la ósmosis describe el movimiento neto del disolvente a través de una barrera selectivamente permeable debido a una diferencia de potencial químico, mientras que la difusión simple se refiere al desplazamiento molecular sin intervención de transportadores específicos.
La importancia fisiológica de la difusión simple reside en que permite intercambios moleculares esenciales sin exigir un gasto directo de energía metabólica para cada evento de transporte. Contribuye al movimiento de gases respiratorios, facilita la permeación de determinadas moléculas pequeñas y liposolubles y participa en la distribución de compuestos entre compartimentos celulares. También tiene relevancia en farmacología, porque la capacidad de un medicamento para atravesar membranas puede influir en su absorción, su distribución entre tejidos y su llegada al interior de las células. No obstante, una sustancia que atraviesa fácilmente una membrana no necesariamente alcanza una concentración elevada en todos los compartimentos: su distribución final depende también de su ionización, de las diferencias de potencial químico y eléctrico, de su unión a componentes celulares y de los procesos que la producen, transforman o eliminan.
En síntesis, la difusión simple se explica por la interacción entre el movimiento térmico aleatorio de las moléculas, la tendencia termodinámica a reducir las diferencias de potencial químico y las propiedades físicas y químicas del medio que deben atravesar. Su velocidad no depende de un único factor, sino de la combinación del gradiente de concentración, el coeficiente de difusión, el área disponible, la distancia de transporte y la permeabilidad de la barrera. En las membranas celulares, esta última propiedad depende especialmente del tamaño, la polaridad, la carga y la afinidad lipídica de la sustancia, así como de la composición y organización de la bicapa. Comprender estas relaciones permite distinguir la difusión simple de otros mecanismos de transporte y explicar por qué algunas moléculas atraviesan espontáneamente las membranas, mientras que otras necesitan proteínas especializadas o mecanismos que consumen energía.
Fuente y lecturas recomendadas:
- Brandl, M. (2008). Passive diffusion across membranes. En Encyclopedia of Cell Biology. Wiley. https://doi.org/10.1002/9780470048672.wecb432
- Scott, D. O., Ghosh, A., Di, L., & Maurer, T. S. (2017). Passive drug permeation through membranes and cellular distribution. Pharmacological Research, 119, 234–246. https://doi.org/10.1016/j.phrs.2016.11.028
- Stillwell, W. (2013). Membrane transport. En An introduction to biological membranes (pp. 305–337). Elsevier. https://doi.org/10.1016/B978-0-444-52153-8.00014-3
- Yang, N. J., & Hinner, M. J. (2015). Getting across the cell membrane: An overview for small molecules, peptides, and proteins. En Methods in Molecular Biology, 1266, 29–53. https://doi.org/10.1007/978-1-4939-2272-7_3
Aprende administración paso a paso
ADMINISTRACION DESDE CERO
Originally posted on 29 de enero de 2023 @ 8:11 AM


